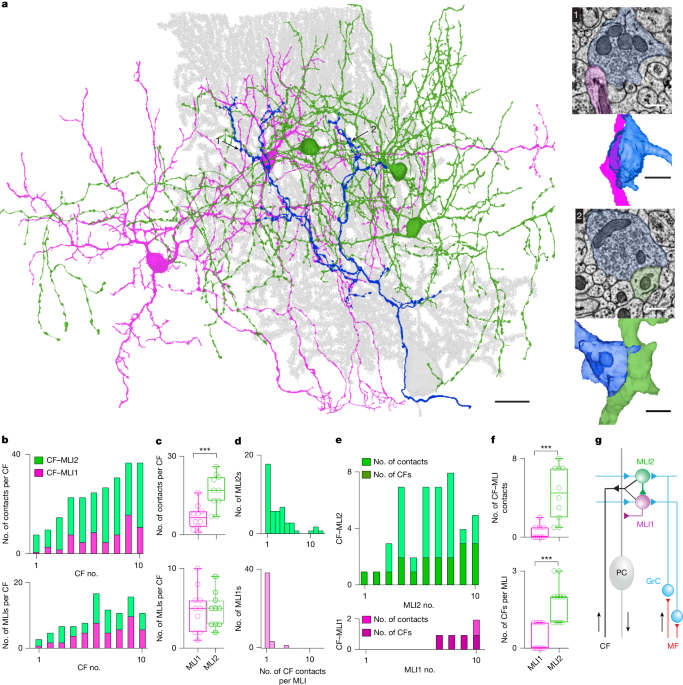
Реконструкции на ЕМ бяха базирани на единичен животно. Преди това бяхме изобразили и наредили обем от 770 × 750 × 53 μm3 от лопата V на мишиния мозък за ЕМ реконструкции, състоящи се от 1,176 паразагитални секции с дебелина от 45 нм. Използвахме автоматизиран сегментационен метод на изображенията, за да генерираме граници на невроните. Използвахме сегментацията на невроните, за да реконструираме десет CF, които бяха идентифицирани по характерната им морфология, като големите им аксони проникваха в молекулния слой и се протичаха вдълж индивидуалните ПК. Всички тези CF бяха реконструирани изцяло в молекулния слой, а дендритните корони на свързаните ПК бяха съдържани в ЕМ обема.
Контактите на CF с MLIs бяха идентифицирани чрез физическия контакт на бутон на CF с дендрит на MLI. Везикулите бяха присъствали в тези бутони, но те не бяха сгрупирани в близост до пресинаптичните активни зони, и PSD не бяха асоциирани с тези места на контакт. Контактите на MLI бяха анализирани за десет CF и бяха подразделяни на MLI1 или MLI2 въз основа на предишни методи за идентификация. Повърхностните площи на контактите на CF с MLIs бяха определени чрез проследяване на контактната площ с помощта на анотационни инструменти в Neuroglancer, извличане на техните триизмерни (3D) координати и чрез MATLAB изчисляване на 3D повърхностната площ. Синапсите на паралелни влакна върху MLIs бяха определени по техните бутони с малък диаметър и напълно паралелна морфология, която беше проследена през дълбочината на набора от данни.
Синапсите CF-MLI1-PC и CF-MLI2-MLI1-PC върху локални и съседни ПК бяха идентифицирани чрез автоматизирано предсказване на синапси. Съседният ПК беше определен като ПК, непосредствено съседен на ПК, който има идентифициран CF. Общо 608 синапса CF-MLI1-PC бяха направени върху локални ПК и 388 върху съседни ПК, докато общо 2,799 синапса CF-MLI2-MLI1-PC бяха направени върху локални ПК и 2,583 бяха направени върху съседни ПК. Анализът на пътя беше извършен с помощта на Python. Реконструкциите бяха използвани за оценяване на частта от GrC-MLI контактите, които са повлияни от CF контактите.
Експериментите с резци на животни бяха извършени в съответствие с насоките на Националния институт по здравето и комитета за грижи и употреба на животни, одобрени от Комитета на Харвард Медикал Скул за грижи за животните. Мишките C57BL/6 бяха получени от Чарлс Ривър Лаборатории. Животните от двете пола бяха случайно избрани за експерименти. Животните бяха настанени на нормален цикъл светлина-тъмно с околна температура от 18-23 °C и влажност от 40-60%.
Акутните паразагитални резци (220-µm дебелина) бяха подготвени от мишки C57BL/6 на възраст от P28–45. Мишките бяха анестезирани с интраперитонеално инжекция от 100 mg kg−1 кетамин и 10 mg kg−1 ксилазин и бяха преминати транскордиално с ледена разтвор съдържащ (в мМ): 110 холин хлорид, 7 MgCl2, 2.5 KCl, 1.25 NaH2PO4, 0.5 CaCl2, 25 глюкоза, 11.6 натриев аскорбат, 3.1 натриев пируват и 25 NaHCO3, еквилибрирани с 95% O2 и 5% CO2. Резците бяха изрязани в същата разтвор и след това преместени в изкуствена мозъчна течност (ACSF), съдържаща (в мМ): 125 NaCl, 26 NaHCO3, 1.25 NaH2PO4, 2.5 KCl, 1 MgCl2, 1.5 CaCl2 и 25 глюкоза, еквилибрирани с 95% O2 и 5% CO2. Както е посочено, някои експерименти бяха извършени при повишено външно калций (2.5 мМ). След инкубация при 34 °С за 30 минути, резците бяха поддържани до 6 часа при стайна температура до записването.
Записите бяха извършени при 32 °С с вътрешно решение, съдържащо (в мМ): 35 CsF, 110 CsCl, 10 HEPES, 10 EGTA и 2 QX-314 (рН коригиран до 7.2 с CsOH, осмоларност коригирана до 300 мОсм кг−1). Визуално насочените записи на целия клетъчен сигнал бяха получени с пач пипети със съпротивление от около 3 МΩ, изтеглени от боросиликатни капиляри (BF150-86-10, Sutter Instrument). Електрофизиоложните данни бяха събирани с усилвател Multiclamp 700B (Axon Instruments), дигитализирани на 20 kHz и филтрирани на 4 kHz с помощта на Igor Pro (Wavemetrics), работещ с mafPC (любезност на M. A. Xu-Friedman). Събирането и анализът на данните от резците се извършваха с помощта на индивидуални процедури, написани в Igor Pro (Wavemetrics). Към раствора от ACSF бяха добавени рецепторни антагонисти, за да блокират гама-аминомаслената и глицинергичната синаптична активност (в μМ): 10 SR95531 (габазин), 1.5 CGP и 1 стрихнин. Всички лекарства бяха закупени от Abcam и Tocris. Не бяха използвани анализ на мощността или други статистически методи за предварително определяне на обемите на изследванията. Обемите на изследванията бяха подобни на предишни публикации.
Записите на MLIs бяха извършени при волтаж -65 мВ. Записите бяха направени от лопи IV–V на вермиса. Записите бяха направени от MLIs във вътрешните две трети от молекулния слой и идентификацията на MLI1 и MLI2 се извършваше по техните характерни електрически свойства, както е описано по-рано. MLI1 и MLI2 са молекулно и функционално различни класове интернеурони, преплетени в молекулния слой. MLI2 имат относително униформирани свойства, независимо от тяхното местоположение в молекулния слой, докато MLI1 обхващат непрекъснат молекулен градиент, пространствено разпределен от най-близо до ПК слоя към върха на молекулния слой. MLI1 и MLI2, идентифицирани с помощта на клетъчни попълнения и пост хок ин ситу хибридизация, изявиха различни електрически свойства. MLI1 изразяват конексин 36, те са електрически свързани помежду си и спонтанните акционни потенциали в съседни MLI1 пораждат спайклети, докато MLI2 не изразяват конексин 36, те не са електрически свързани с други клетки и спайклети не са присъствали. Класификацията на MLIs със спайклети като MLI1s беше извършена. Въпреки че спайклетите са присъствали в повечето MLI1s, липсата на спайклети не беше достатъчна за идентификация на MLI2s, защото спайклетите в MLI1s изискват целостно спонтанно палене в съседни MLI1s, което може да бъде нарушено от лошо здраве на резеца или от изрязването, което уврежда MLIs близо до повърхността на резеца. MLI1s имат съпротивления на входа в диапазона на около 200 MΩ близо до PC слоя и до около 1 GΩ близо до върха на молекулния слой, докато повечето MLI2s имат съпротивления от над 1 GΩ. Намерихме, че съпротивленията както на MLI1s, така и на MLI2s бяха малко по-високи с нашето цезиево вътрешно решение, в сравнение с калиевите вътрешни решения, използвани в предишни изследвания. MLI2s бяха идентифицирани чрез липсата на спайклети и съпротивления на входа от над 1 GΩ. Експериментите не бяха извършени на неврони със съпротивления в обхвата от 500 MΩ до 1 GΩ и липсващи спайклети (по-малко от 5% от всички MLIs), защото те не можеха да бъдат еднозначно категоризирани само на базата на електрическите им свойства. Избягвахме клетките в горната трета част на молекулния слой, където MLI1s обикновено имат по-високи съпротивления на входа и повечето MLI1s липсват спайклети. Този подход осигурява класификация с високо ниво на увереност на MLI1s и MLI2s, базирана на пасивни електрически свойства в реално време, без да е необходимо пост хок ин ситу хибридизация, но изключва някои MLI1s, които липсват на спайклети, изключва малък брой MLI2s със средни съпротивления и изключва MLIs в горната трета на молекулния слой.
Използвахме стъклен електрод за стимулация, за да стимулираме CFs в слоя на GrC с двойки стимули (350 μs продължителност, 50-мс интервал между стимулите, 10–100 μA, интервал от 10 секунди между опитите) на различни места в зона с радиус около 50 μm в слоя на GrC и около 100 μm от всеки единия страни на сомата на записвания MLI. Записвахме повече от десет места на клетките за търсене на входи, които бяха от тип “всичко или нищо” и с изразено PPR (PPR < 0.6). След това намалихме интензитета на стимулацията до прагова стойност, за да оценим характера на отговора и замърсяването от входовете на GrC. Стимулацията на праговата стойност за активиране на CF стохастично подсич